
01
每一步都由ATP买单
蹬离起跑器冲出去,或者在陡坡上站起来踩踏板。肌纤维每收缩一次,都要消耗一种叫ATP的小分子,它是所有细胞通用的能量货币。你的肌肉里存的ATP,只够全力运动一两秒。可肌肉里的ATP从来不会用光。哪怕在最拼的一次冲刺结束时,ATP的水平最多也只下降三分之一。原因很简单:你用得多快,身体就重新合成得多快。
秘诀在于循环利用。每个ATP用掉时会分解成ADP和磷酸,然后再被重新合成,一遍又一遍。任何时刻,你全身只有大约50到100克ATP。可你每天重新合成的ATP有几十公斤,如果你经常运动,差不多相当于你的体重。跑一场马拉松要用掉约50到60公斤ATP,比大多数跑者的体重还多。安静时,这些重新合成里约有90%,都发生在你眼前这台机器里。
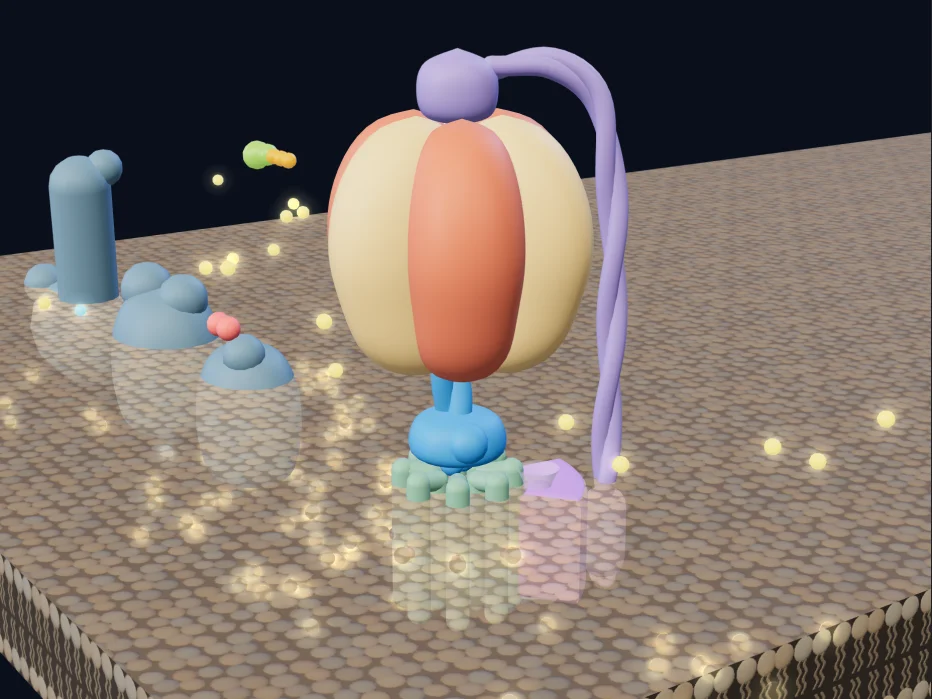
这台机器就是ATP合酶,一台由蛋白质构成的旋转马达。线粒体是细胞的发电厂,它的内膜向里折叠,这些褶皱叫作嵴,ATP合酶就嵌在这些嵴上。它的头部伸进基质,也就是内膜围住的那片空间。真实的马达两两成对,沿着褶皱弯曲的边缘排成长列,模型里只画了一台。每台马达高约24纳米,1纳米是百万分之一毫米。大约3000台首尾相叠,才有一根头发那么粗。
它有四个主要部分。头部由六块组成,三块叫α,三块叫β,ATP就在这里合成。一根弯曲的轴从头部中间穿上去。底部有一个由8片叶片组成的环,在膜里转动。环和轴合在一起,就是转子。一根侧臂把头部稳稳固定住。模型用的是简化的形状,速度放慢了,转动也画得很平滑。拖动模型下方的时间轴,可以亲手转动转子;拖动模型本身,可以从任何角度观察。
02
你为什么会大口喘气
长坡爬到一半,你的呼吸又快又深。这些空气是给线粒体用的。你吃下的食物被分解后,其中的电子会交给一种叫NADH的载体分子。在嵴平坦的部分,电子传递链把这些电子依次传过三个质子泵。每个泵都借电子的能量,把质子推出基质。每个NADH能让10个质子被推出去。模型里的泵做了简化,也没有按比例画。
氧气是这些电子的最后一站。在最后一个泵那里,氧气接过电子,变成水。没有氧气,电子就无处可去,泵也就停了。这就是你大口喘气的原因:每一口呼吸都让泵继续工作。泵的工作在膜两侧建立起约200毫伏的推力,其中大部分是电压,而这层膜只有约4到5纳米厚。质子挤着想回到基质里,它们回去的主要通道就是ATP合酶。
拖动滑块,设定你吸入多少氧气。氧气越多,这些马达能造的ATP就越多。如果你体重70公斤,安静坐着时每分钟约用0.25升氧气,一天下来相当于约40公斤ATP。全力运动时,上限是你的最大摄氧量(VO2max),也就是每公斤体重每分钟最多能用多少氧气。年轻成年人中,男性一般约为48毫升/公斤/分钟,女性约为38。耐力项目的冠军能达到70到85。已发表的最高值是96.7,属于一位青年世界冠军自行车手,也就是滑块的最右端。
每一口气能换来多少ATP?每个氧分子约5个ATP,每个NADH约2.5个。一个葡萄糖在有氧时彻底燃烧,约产生30个ATP。没有氧气时,糖酵解只能把葡萄糖分解到半途,只产生2个ATP。如果糖来自肌肉里储存的糖原,则是3个。所以同样一克糖,有氧时得到的ATP要多好多倍,而多出来的ATP大部分出自这些马达。
03
每圈八个质子
想象一场大赛开赛前的体育场入口。没人能直接走进去:每个球迷都得推动旋转闸机才能进场,人群让闸机转个不停。质子遇到的也是这样一道门。它们没法自己穿过由脂质构成的膜。转子环旁边是a亚基,也就是质子门。它有两条半通道,但两条并不对齐,所以没有一条贯穿膜的直通隧道。
质子从膜间隙那一侧沿入口半通道上来,落到一片叶片上。每片叶片都带有一个谷氨酸,这种氨基酸正好位于膜的中间,能抓住一个质子。环一转,质子就跟着它在膜中间的脂质层里转上将近一整圈。当它所在的叶片回到门口时,质子便从出口半通道离开,进入基质。从基质一侧看,这个环是逆时针转的。
人类的环有8片叶片,所以每转一圈要通过8个质子。一圈造3个ATP,所以每个ATP约需2.7个质子。叶片的数目决定了这个价格。点一点下面的按钮,比较其他的环:酵母和大肠杆菌用10片,菠菜叶用14片。它们转一圈同样只造3个ATP,所以它们的ATP更贵。你的环很小,按质子算,它造出的ATP是自然界最便宜的。
如果再算上把ADP和磷酸运进来、把新ATP送到细胞其他地方的花费,一个ATP的完整价格约为3.7个质子。模型里的环转得很平滑,但真实的转子是一步一步转的。它会停顿,再往前跳,偶尔甚至会倒退一步。每个质子转完这一圈、离开进入基质,都会把环朝制造ATP的方向推进一片叶片。
04
三个位点,各造一个ATP
骑车时,你的双腿转动曲柄,而车架围着它纹丝不动。这台马达的上半部分也是这样。弯曲的轴在头部里面转动,侧臂则把头部固定住,就像车架围着曲柄。所以头部从不旋转。因为轴是弯的,它转动时会依次顶压头部的各个部分,就像凸轮轴依次打开发动机的气门。
三块β各有一个位点,ATP就在这里合成。任何时刻,这三个位点都处在三种不同的状态。轴每转一步是120°,每一步都让每个位点进入下一个状态。开放的位点接纳ADP和磷酸,变成松弛状态。松弛的位点收紧,把它们挤压成ATP。紧密的位点张开,放走新造的ATP。所以转一圈造3个ATP。真实的位点在这些状态之间,还会经过半闭合的状态。下面几行会实时显示各个位点。
能量到哪里去了?并没有存进某个特殊的化学键:打断任何化学键都要消耗能量。ATP之所以能提供能量,是因为整个反应,也就是ATP分解成ADP和磷酸,得到的产物更稳定。在细胞里,这大约是每摩尔50到60千焦。质子的推力花在让位点抓紧和松开上:先紧紧抓住ADP和磷酸,直到它们结合,再松手放走造好的ATP。这就是结合变化机制。
保罗·博耶弄清了这个机制,约翰·沃克解出了支持它的结构。他们与延斯·斯科共享了1997年的诺贝尔化学奖,不过斯科获奖是因为他对钠钾泵的研究,那是另一种分子机器。真实的步子还分得更细。科学家让人类ATP合酶的头部反向运转、分解ATP,测到每一步120°会分成65°、25°和30°三小步。细菌版本的转矩约为40pN·nm,是已知效率最高的马达之一。
05
为什么短跑等不及这台马达
发令枪一响,短跑运动员从起跑器上猛冲出去。模型现在按这台马达估计的真实速度播放。在工作中的线粒体里,它每秒约转100圈,约合每分钟6000转,每秒约造300个ATP。看看计数器往上跳。2026年一级方程式赛车的涡轮增压器,转速最高可达每分钟15万转,约是它的25倍。可对短跑运动员来说,这台马达是慢车道。
短跑时,肌肉消耗ATP的速度,超过了所有马达加起来的生产速度。于是两套更快的系统来填补缺口。磷酸肌酸是肌肉里的一小份储备,几乎能瞬间补充ATP,但全力运动10到15秒就基本用完了。糖酵解不需要氧气,速度也快,可每个葡萄糖只能产生很少的ATP。这三套系统同时工作。它们相互重叠,而不是一个接一个地启动。
点选一个项目,看看它的能量有多少来自这台马达,也就是有氧供能。100米只有约10%到20%,而且不同测量方法的结果并不一致。200米约30%,400米约40%到45%,800米约三分之二,1500米约80%到85%。5000米约90%,马拉松约99%。有氧和无氧各占一半的交叉点,出现在全力运动约75到80秒时。所以400米和800米并不像人们常说的那样是无氧项目。
马拉松的问题正好相反。马达有的是时间,燃料却不够用。你体内储存的碳水化合物只有约400克:肝脏里大约90克,腿部肌肉里大约310克。碳水快用完时,超过40%的马拉松跑者会撞墙。脂肪储备要多得多,但你燃烧脂肪最快也只有每分钟约半克。在肌肉里,这样给质子泵供应电子太慢了,马达跟不上比赛配速。
06
训练为更多马达腾出空间
开始一个以稳定骑行或跑步为主的训练周期,几周之内,你的肌肉就会开始变化。六周耐力训练能让线粒体增加约40%到55%。增加的大部分来自原有的线粒体变大,而不是造出新的。在这方面,练多少最重要。练多狠,则对线粒体工作得好不好影响更大。更大的线粒体有更多内膜,更多的膜就意味着有更多空间容纳这些马达。
线粒体在肌肉里占多大比例?未经训练的大腿肌肉里,约占4%到5%。训练有素的耐力运动员,约占7%到11%。你的心脏从来没有休息日,约四分之一是线粒体。但数量并不是全部。体能更好的人,即使线粒体一样多,每个线粒体也能干更多的活。所以训练有双重好处:线粒体更多了,而且每个都工作得更好。
几周的训练会增加线粒体,但里面的褶皱排得还是一样密。只有多年训练才能改变这一点。在耐力运动员身上,嵴的密度要高约23%,所以每个线粒体都有更多的膜来安放马达。还没有人数过训练前后的马达数量,所以模型按测得的褶皱膜面积,按比例画出马达。点选下面的按钮,比较未经训练的肌肉、训练10周后和多年训练后的样子。
一旦停练,收获就消退得很快。这种停训效应大约两周就会带走一半的收获。所以要坚持练下去。下次你在爬坡时大口喘气,想想这口气是为了什么。在你的肌肉深处,它让质子泵不断把质子推出去,让质子乘着转子环回来,让这些马达转个不停,每转一圈造三个ATP。